



自己分解性SiO2ナノ粒子を用いた精密リソソームpHセンサーの開発
概要
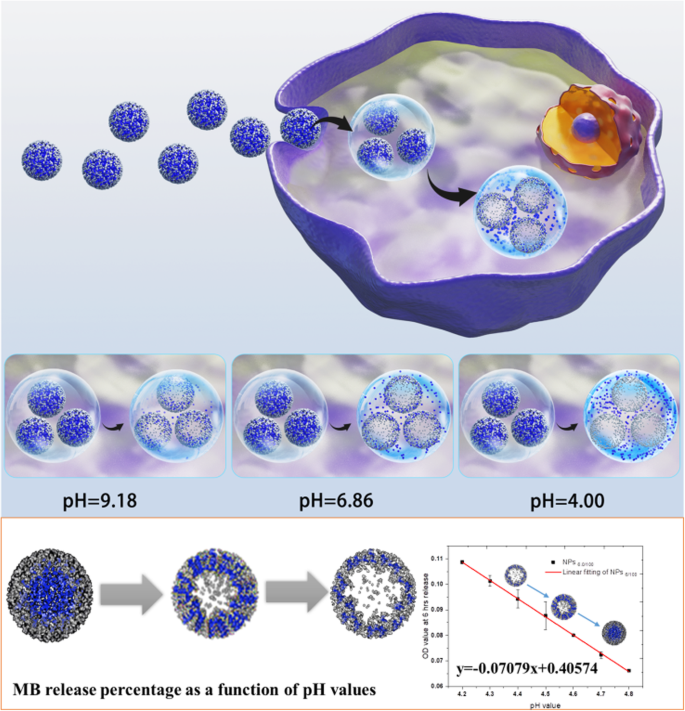
リソソームの酸性pHはオートファジーと密接に関連しており、リソソームの精密なpH変化を把握することはオートファジーのプロセスと状態に関する更なる情報を提供します。しかし、これまでリソソームpHの変化を比較的広い範囲でしか示すことができず、正確なリソソームpH検出は実現していませんでした。本研究では、特定の合成パラメータを持つ自己分解性SiO2ナノ粒子システムに基づくエンド/リソソームpH指標を確立しました。中空構造ナノ粒子の中心に濃縮されたメチレンブルー(MB)が、リソソームのpH範囲であるpH 4.0〜4.8で感度よく放出されることを示しました。光学密度(OD)値とpH値の線形相関を構築し、これを6種類の細胞株でのリソソームpH検出に使用。さらに、このシステムにより黒色メソポーラスシリコン(BPSi)NPエンドサイトーシス前後のリソソームpH平均変化を精密に検出し、BPSiエンドサイトーシス後のオートファジー終了メカニズムを解明。自己分解性ナノ粒子ベースの腔内pH指標は、リソソームpHをより良く理解し、オートファジープロセスや代謝に関する他の重要なシグナリングの詳細を示す新たな方法論と戦略を提供する可能性があります。
導入
リソソームはマクロ分子の最終目的地であり、低pHで活性化する加水分解酵素によってこれらマクロ分子が分解されます。バキュオラ型H+-ATPase(v-ATPase)[2]がプロトンを細胞質からリソソーム腔内へ輸送することで維持されるリソソームの酸性pHは、約60種類の加水分解酵素の活性を保つために機能します[3]。さらに、最近の文献報告はリソソームの酸性pHがオートファジーと密接に関連していることを明らかにしており[4]、精密なリソソームpH変化を把握することはオートファジーのプロセスと状態に関する更なる情報を与えます。本研究と文献レビューに基づき、アミン陽性帯電ナノ粒子のエンドサイトーシスはエンド/リソソームのpH変化を増加させる可能性があります。例えば、一次および二次アミンPEG修飾ナノ粒子や、粒子表面への親水性修飾などです[5, 6]。
アミンナノ粒子のエンドサイトーシスによるpH上昇は、転写因子EB(TFEB)の核局在を劇的に増加させ[7]、経路の転写的アップレギュレーションをもたらすだけでなく、リソソーム機能不全を引き起こし、最終的にはオートファジーフラックスの遮断を招きます[7,8,9]。TFEBはオートファジーを制御し、その結果、その過剰発現は培養細胞でオートファゴソーム産生の有意な増加をもたらします。
したがって、オートファジープロセスとその詳細を予測するためには、リソソームの精密なpHとその変化の測定が極めて重要です。これまで、エンド/リソソームpH値指標に関する文献レビュー[10]と市販のエンド/リソソームpH値検出製品では、比較的広い範囲でのpH変化しか示せず、正確なリソソームpH検出は実現していません。したがって、オートファジーの詳細な洞察を得るためには、精密な腔内pH変化検出法の確立が重要なアプローチとなります。
自己分解性SiO2ナノ粒子に関する過去の経験に基づき、本研究では腔内pH変化検出を実現する精密pH指標を確立しました。SiO2ナノ粒子はサイズ調整可能性と生体適合性に優れています[11]。特定の合成パラメータを設定することで、確立した自己分解性SiO2pH指標は、リソソームのpH範囲であるpH 4.0〜4.8でペイロードであるメチレンブルー(MB)を感度よく放出できます。さらに、MB放出はpH値変化と線形相関を示します(スキーム1)。その後、6種類の細胞株を導入して細胞レベルでのpH指標の実現可能性を検証し、黒色メソポーラスシリコン(BPSi)NPエンドサイトーシス前後のリソソーム平均pH変化を決定することに成功し、BPSiエンドサイトーシス後のオートファジー終了メカニズムを解明。自己分解性ナノ粒子ベースの腔内pH指標は、リソソームpHをより良く理解し、オートファジープロセスや代謝に関する他の重要なシグナリングの詳細を示す新たな方法論と戦略を提供する可能性があります。
材料と方法
材料
ナトリウムシリサイド(NaSi)とSiウェーハ(直径20 cm、p+ (100)、0.01〜0.02 Ω cm)はSiGNa Chemistry Inc.とOcmetic Inc.から提供。臭化アンモニウム(NH4Br、99%)、臭化ナトリウム(NaBr、99%)、トルエン(無水、99.8%)、塩酸(HCl、37%)、MB、テトラエチルオルトシリケート(TEOS)はSigma-Aldrichから購入。0.5 kDaメトキシ-PEG-シランと2 kDaメトキシ-PEG-シランはFluorochem Ltd.とLaysan Bio Inc.から別々に購入。RPMI 1640培地はLife Technologiesから提供。胎児牛血清(FBS)はTianHang生物技術から購入。炭酸水素ナトリウム、硫酸ストレプトマイシン、ペニシリンG、HEPES、リゾチーム溶液、CellLight Early-endosomes-GFP、LysoTracker™ Red DND-99、Pierce® BCA Protein Assay Kit、增強化学発光、pHrodo™ Red Transferrin conjugate、Live Cell Imaging Solution、Trizol試薬はThermo Fisher Scientificから購入。エタノールとアンモニア水はSinopharmから提供。BioRT Master HiSensi cDNA First-Strand Synthesis kitはHangzhou Bioer Technology Co., Ltd.から購入。RIPA溶解液はHeart Biological Technology Co., Ltd.から購入。P62、TFEB、β-アクチン抗体はProteintech Group, Inc.から購入。LC 3B抗体はAbcamから提供。2-(4-ピリジル)-5-((4-(2-ジメチルアミノエチル-アミノカルバモイル)メトキシ)フェニル)オキサゾール(PDMPO)はYeasen Biotech Co., Ltd.から提供。
研究の目的、デザイン、設定
本研究の目的は、(1) BPSiナノ粒子のHepG2細胞におけるオートファジーへの影響を探究、(2) リソソームpH値変化がオートファジーに与える影響のメカニズムを発見、(3) リソソームpHを精密に測定できる精密リソソームpH指標を確立、(4) pH変動がオートファジーに与える影響を示すことです。上記研究目的を実現するため、トランスクリプトームシーケンシング実験でBPSiナノ粒子投与後のHepG2細胞トランスクリプトーム遺伝子変化を探究し、RT-qPCRとWestern実験で検証。蛍光染料PDMPOなどを用いてBPSi投与後のHepG2細胞リソソームpH変化を測定。リソソームpHを精密に測定するため、10パラメータでMB@SiO2ナノ粒子を開発し、DLSとHR-TEMなどの実験でこれら10種類のナノ粒子のキャラクタリゼーションを検証。10系列自己分解性ナノ粒子システムのMB担持効率と放出動力学を異なるpH溶液とHepG2細胞で検証。細胞内でのナノ粒子局在を検証するため、細胞TEM実験と生細胞共焦点顕微鏡を実施。最後に、BPSi投与後の6種類の細胞でのリソソームpH変化を測定し、MB@SiO2ナノ粒子によるリソソームpH変化測定の汎用性を検証。
BPSiナノ粒子合成
BPSiナノ粒子は従来法[12]で調製し、共同研究者(Wujun Xu、東フィンランド大学応用物理学部)から提供。BPSi、NaSi、アンモニウム塩、NaBr(NaSi:NH4Br:NaBr = 1:4:4、重量比)をアルゴン雰囲気グローブボックス内で粉砕。窒素雰囲気下、管状炉で240℃、5時間反応(式1)。室温冷却後、得られた微粒子を0.5 M HClと1.0 M HF溶液で別々に洗浄精製。微粒子をエタノール中で1000 rpm、15分ボールミル粉砕し、遠心速度調整で所望直径のBPSiナノ粒子を回収。
$$ \mathrm{NaSi}+{\mathrm{NH}}_4\mathrm{Br}\to \mathrm{NaBr}+{\mathrm{NH}}_3+\mathrm{Si}/\mathrm{H}+{\mathrm{H}}_2 $$ (1)動的光散乱実験でナノ粒子の径分布と表面電荷を調査。全NPを滅菌後、わずかな超音波処理(5秒、均一分散のため、超音波洗浄機SB-5200DT、Ningbo Scientz Biotechnology Co., Ltd.)で培地に分散させ、直ちに細胞へ導入。
10系列自己分解性ナノ粒子システムの確立
10系列自己分解性ナノ粒子は、以前報告した手法[13,14,15,16]で修正パラメータを用いて合成。典型的手順では、一定量のMBをエタノール(75 mL)とアンモニア水溶液(25%、3.4 mL)の混合物に添加、その後一定量のTEOSを添加。24時間攪拌後、3回洗浄して乾燥し、系列自己分解性MB@SiO2 NPを取得。プロトコルで添加したMBとTEOS量は表1に記載。NP1.0/100における1.0/100の意味は、ナノ粒子合成時のMBとTEOSの在庫量で、MB 1.0 mgとTEOS 100 μLを意味。NP1.5/100の1.5/100なども同様。
細胞培養
自己分解性ナノ粒子ベースpH指標の効率と汎用性を検証するため、特定の腫瘍由来がん細胞株でテストを試みた。肝癌、肺癌、大腸癌、メラノサイトーマ細胞株を研究対象として選択。ヒト大腸癌細胞HCT116、HCT8、HCT15;ヒト肝癌細胞HepG-2;ヒト肺癌細胞A549;マウスメラノーマ細胞B16を、RPMI 1640培地(Life Technologies)に10%熱不活性化FBS、2.0 g/L炭酸水素ナトリウム、0.1 g/L硫酸ストレプトマイシン、0.06 g/LペニシリンG、5.958 g/L HEPESを補完して維持。細胞を標準的細胞培養インキュベーターで37℃、湿度5% CO2条件下で維持。
10系列自己分解性ナノ粒子システムのキャラクタリゼーション
全系列ナノ粒子の形態をSTEMモード付きHR-TEMでキャラクタリゼーションし、EDS元素マッピングでSiマッピングを調査。ImageJソフトウェアでランダム選択したSTEM像のナノ粒子直径を計算し、ナノ粒子サイズ分布解析を実施。ナノ粒子のゼータ電位と多分散性指数(PDI)を、特定pH値の系列バッファーで動的光散乱(DLS)測定で計測。データをSPSS15.0で解析、統計結果を平均±標準偏差で提示。
10系列自己分解性ナノ粒子システムのMB担持効率と放出動力学研究
MB担持効率と放出動力学を研究するため、まず系列濃度のMB標準曲線を確立。UV-VisスペクトルでMB吸光度を測定、モノマーMBのλmaxである660 nmでの吸光度を使用。MB担持効率は以下の式で計算:MB担持効率(%)= 封入MB量 /(総MB投入量)。
10系列ナノ粒子からのMB放出を、純水と異なるpH値のpHバッファー(pH 4.0、pH 6.86、pH 9.18)およびリゾチーム溶液(Thermo Scientific™ #90082)で研究。さらに、異なるpHバッファーでの特定期間後のMB放出動力学も調査。660 nmでのOD値と時間関数としてのMB放出率を研究。
詳細には、MB放出研究を以下のプロトコルで実施:10系列ナノ粒子をpH 4.0、6.86、9.18の標準バッファー15 mLにリゾチーム溶液とともに溶解;37℃でフラミキサーでMB放出実施。その後15日間、各サンプルから1 mL採取、12000 rpm、10分遠心。上清と沈殿の吸収スペクトルを200〜800 nmで測定。
さらに、リゾチーム溶液を含む精密pHバッファー(pH 4.1〜5.5範囲)でのMB放出も上記同プロトコルで調査。特定時間(6時間、12時間、24時間)を観察時点として設定。各サンプルで660 nmでの吸光度を記録。各時点での各pH溶液の吸光度の線形関係と残差平方和をそれぞれ算出。
細胞内MB放出プロファイルを検出するため、HepG-2細胞を75 cm2培養フラスコで培養し、細胞がフラスコの70%まで増殖した時点でNP(300 μg/mL)を投与。以降30分ごとに細胞を回収。細胞を繰り返し凍結融解し、細胞内MBを完全に放出。細胞溶解液を12000 r/min、10分遠心。上清を取得し、660 nmでの吸光度を測定して放出総MB量を算出。本研究ではHepG2細胞を研究対象とした。その速い細胞増殖により、全10テスト群間の分散を最小化できるため。
10系列ナノ粒子の細胞内コロカライゼーションと6種類細胞株での放出性能
標準細胞TEMプロトコルに従い、細胞TEMでナノ粒子のエンド/リソソーム内コロカライゼーションを研究。細胞を1×106 cells/flaskの密度で播種し、24時間インキュベートして細胞付着を許容。培地中の同濃度(100 μg/mL)の10系列ナノ粒子を細胞とさらに12時間と24時間インキュベート。細胞をPBSで3回洗浄し余分なナノ粒子を除去、2.5%グルタルアルデヒド溶液で1日以上固定。固定細胞を洗浄し、脱イオン水中1%四酸化オスミウムで1時間染色、PBSで3回、DI水で2回洗浄。従来の細胞TEMプロトコル[17, 18]を実施、厚さ90 nmの切片を回収しTEM観察。MB放出をpH値の関数として、NP6/100とNP7.5/80の両方で6細胞株で研究。また、MB放出からのOD値とMB放出率を記録してデータ解析に使用。
MB@SiO2ナノ粒子の細胞内取り込み調査
生細胞共焦点顕微鏡でMB@SiO2ナノ粒子の細胞取り込みと細胞内運命を評価。HepG-2細胞初期エンドソームを染色(CellLight Early-endosomes-GFP、BacMam 2.0 ThermoFisher Scientific C10586、励起/放射∼488/510 nm)16時間。その後、NP6/100(MB励起/放射:640/650〜700 nm)をナノ粒子濃度100 μg/mLで特定時間間隔(2時間、2.5時間、3時間、5時間、6時間)インキュベート。画像取得前に、LysoTracker™ Red DND-99(Thermo Fisher Scientific L7528、励起/放射:577/590 nm)でライソトラッカー染色40分。その後、染色液を除去し、PBSで2〜3回洗浄。Nikon A1R共焦点顕微鏡で画像取得。
BPSi投与後の遺伝子発現変化評価のためのトランスクリプトームシーケンシング
コントロール群とBPSi処理群の総RNA抽出をTrizol試薬で標準操作手順に従い実施。初期総RNAサンプルの品質をNanoDrop ND-2000分光光度計で検出。品質管理をパスした総RNAを後続シーケンシング実験に使用。次世代シーケンシングで遺伝子発現比較を実施。全シーケンシングプログラムをBGI-Shenzhen Corporation(深圳、中国)でBGISEQ-500プラットフォームを使用して実施。シーケンシングで得られた生データを品質管理し、後続解析に適しているか判定。パスした場合、遺伝子発現レベルに基づく遺伝子の定量解析と、選択サンプル間の差異発現遺伝子について遺伝子オントロジー(GO)機能の有意富化解析を実施。
TFEB-CLEAR遺伝子ネットワーク活性化確認のためのRT-qPCRアッセイ
コントロールとBPSi処理群の培養HepG-2細胞からTrizol試薬で総RNA抽出し、BioRT Master HiSensi cDNA First-Strand Synthesis Kit(Hangzhou Bioer Technology Co., Ltd.)でランダムプライマーを用いてcDNAに逆転写。cDNAを用いてApplied Biosystems™ 7500リアルタイムPCRシステム(Applied Biosystems, Life Technologies, Carlsbad, CA)でアクチンを参照対照としてTFEB-CLEAR遺伝子ネットワークを定量PCRで増幅。定量RT-PCR用プライマーを表S4に記載。
BPSi投与後のオートファジー活性化確認のためのWestern Blotアッセイ
コントロール群と異なる濃度BPSi処理群の細胞タンパク質をRIPA溶解液(Heart Biological Technology Co., Ltd.)で抽出。プロテアーゼ阻害剤をRIPA溶解液に添加し氷上で予冷。細胞を予冷PBSで3回洗浄。液を完全に除去し、皿を氷上で2分放置。RIPA溶解液400 μLを皿全面に添加、ピペットで数回ピペッティングし、氷上で30分インキュベート、その間数回振盪して細胞を完全溶解。溶解細胞液を1 ml Eppendorfチューブに移し、13,000 rpm、10分、4℃で遠心。得られた上清を水中で10分沸騰させ、−20℃で後用保存。Pierce® BCA Protein Assay Kit(Thermo scientific)でタンパク質濃度を定量。
総タンパク質25 μg含む細胞抽出液を直接SDS-PAGEにかけ、転写。メンブレンを5%脱脂乳でブロッキングし、P62(Proteintech #18420–1-AP)、TFEB(Proteintech #13372–1-AP)、LC 3B(Abcam #ab192890)、β-アクチン(Proteintech #20536–1-AP)を認識する一次抗体でプローブ。二次抗体は一次抗体の由来種に応じて選択し、増強化学発光(Pierce)またはBio-Rad ChemiDoc XRS + Gel Imaging System(Bio-Rad, USA)で検出。ImageJソフトウェアで密度測定により、BPSi群でのP62、TFEB、LC 3Bのβ-アクチン相対正規化バンド強度を定量。データは3独立実験からの平均±標準偏差。
PDMPOとpHrodo™ Red Transferrin Conjugateによる共焦点顕微鏡での細胞pH測定
PDMPO研究
1×10⁵ HepG-2細胞を無菌共焦点プレートで一晩培養し、BPSiナノ粒子を100 μg/mL濃度で投与。翌日、免疫蛍光染色前に、スライドを0.01 Mリン酸緩衝生理食塩水(PBS)、pH 7.4で3回洗浄、1 μM PDMPO染料(Ex/Em=329/440)を添加。PBSで3回洗浄後、新鮮なRPMI-1640培地でインキュベートし、蛍光顕微鏡(Nikon A1R、日本)でCCDカメラを用いて5分以内に撮影、Chenら[19]の手順に従いリソソーム内の青/緑蛍光強度比を算出。
pHrodo™ Red Transferrin Conjugate研究
HepG-2細胞を同様に共焦点プレートで24時間播種・付着させ、プレートを氷上で10分保持。冷たいLive Cell Imaging Solution(20 mMグルコース、1% BSA含む)で細胞洗浄。Live Cell Imaging Solution中25 μg/mLのpHrodo™ Red Transferrin conjugate(Ex/Em=560/585 nm)を添加し、37℃で20分インキュベート、その後Live Cell Imaging Solutionで洗浄。観察も共焦点顕微鏡で実施。顕微鏡画像の強度定量解析をImageJソフトウェアで実施。
細胞リソソームpH検出
A549、HepG-2、HCT8、HCT15、HCT116、B16細胞を75 cm2培養フラスクで培養し、細胞がフラスクの70%まで増殖した時点でNP投与、6時間後に細胞回収。細胞を繰り返し凍結融解し、細胞内MBを完全放出。細胞溶解液を12000 r/min、10分遠心。上清を取得し、660 nmで吸光度測定して放出総MB量を算出。標準pHでのNP6.0/100吸光度と比較し、各細胞のpH値を取得。
統計解析
SPSS15.0ソフトウェアで、独立群の二元配置分散分析(ANOVA)とTukey HSD法による多重比較検定を実施。統計的有意性はP < 0.05に基づく。
結果と考察
まず、二重PEG機能化黒色多孔性シリカナノ粒子(BPSi NP)(共同研究室提供[12])投与時の差分遺伝子発現を検出。ゼータ電位が−18.5から+2.8 mVへ変化し、表面二重PEG化が成功したことを示唆(図S1a)。BPSiナノ粒子の平均直径は156 nm(図S1b)。差分遺伝子発現のクラスターヒートマップ(図S2)に基づき、2倍以上の差分遺伝子発現を選択し更なる調査を実施。GOとKEGGで差分遺伝子を解析。GO富化バブルマップ(図1a)から、代謝とリソソーム関連遺伝子(ファゴリソソームアセンブリ、ファゴサイトーシス、異物代謝プロセス)を選択し更なる解析。特筆すべきは、TFEB-CLEAR[17]関連遺伝子発現が有意に増加。RT-PCR結果(図1b)も遺伝子シーケンシング結果を検証し、TFEB-CLEAR経路上の遺伝子(CTSD、CTSF、TFEB、MFN1、LAMP2、TPP1など)が有意に増加。これら遺伝子をリソソーム経路上にマーキング(図S3)。発現はコントロール群より高く、統計的有意性あり(PBPSi VS Control < 0.05)。TFEBはリソソーム遺伝子発現を正制御し、リソソーム個体数を制御し、リソソーム基質の細胞内分解を促進。
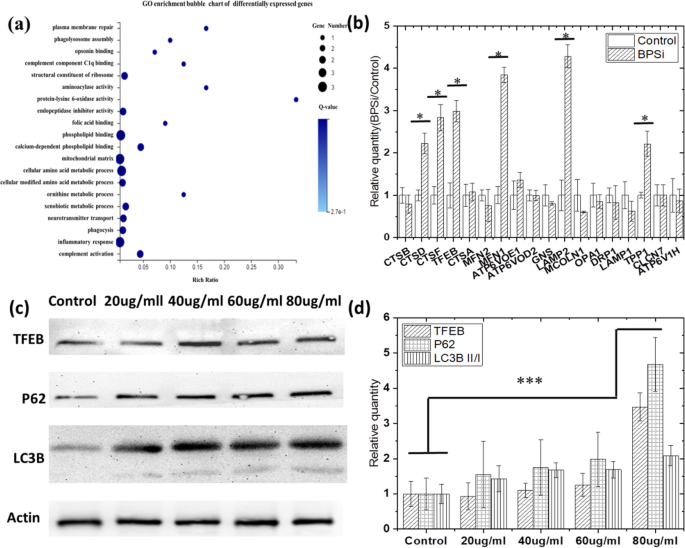
さらに、TFEBはオートファジーを制御し、その主要機能がリソソーム生合成を誘導しオートファジー発生を促進することから[20]、過剰発現は培養細胞でオートファゴソーム産生を有意に増加させます。Western blot解析で、BPSi NP投与時に細胞オートファジーが発生するか検証。Western試験の目的は、TFEB発現増加とBPSi投与後の細胞オートファジー発生をさらに確認すること。LC3BとP62タンパク質は両方ともオートファジーマーカー。オートファジー発生時、微小管関連タンパク質1A/1B-軽鎖3B(LC3B)II/I発現が増加。p62はオートファジーで分解される小胞の受容体であり、ユビキチン化タンパク質凝集体の除去受容体でもあり、オートファジー発生時に発現低下。したがって、これらのタンパク質発現をWestern実験で測定。
図1c、dのWestern blot結果から、TFEB(P80 μg/ml VS control = 0.000008)、LC3B II/I(P80 μg/ml VS control = 0.000297)、p62(P80 μg/ml VS control = 0.000016)タンパク質がすべて有意にアップレギュレート。TFEBとLC3B II/Iタンパク質のアップレギュレーションはオートファジー活性化を示唆[18]ため、BPSiエンドサイトーシスがオートファジー発生を促進すると推測。しかし、p62タンパク質はオートファジー過程でダウンレギュレートされるはずだが、本研究では有意なアップレギュレーションを示しました。これはエンド-リソソーム融合過程での分解終了を示唆[21]し、おそらくエンド/リソソーム小胞のpH上昇が原因。したがって、BPSiエンドサイトーシスはまずオートファジー発生を誘導し、その後アミドのアルカリ性によりエンド/リソソームpH値を上昇させオートファジープロセスを阻害する可能性があります。
BPSiエンドサイトーシスによるエンド/リソソームpH上昇特性を証明するため、2つの市販pH蛍光プローブを使用。pHrodo™ Red Transferrin Conjugate(Thermo Fisher #P35376)とRatioWorks™ PDMPO。
pHrodo™ Redは市販の細胞内pH指標で、通常中性pHで弱蛍光、pH低下で蛍光増強。pKa∼6.5でpH 9〜4範囲の細胞質pHを定量可能、励起/放射560/585 nm。6細胞株決定から定性的分析結論として、BPSi NPエンドサイトーシスがエンド/リソソームpH値を上昇させる能力を持つことを取得(赤色蛍光信号減弱により、図S4、S5)。しかし、製品操作プロトコルに従い数回実験繰り返しても、BPSi NP投与前後での異なる細胞株間の正確なpH値低下を定量的に分析することは困難でした。強度とpH値の相関が確立されていないため。
PDMPOをBPSiエンドサイトーシス後のpH値変化指標のより良い解決策として採用。比率イメージング技術をpH定量測定に導入。PDMPO[2-(4-ピリジル)-5-((4-(2-ジメチルアミノエチル-アミノカルバモイル)メトキシ)フェニル)オキサゾール]は酸親和性二重励起・二重放射pHプローブとして特徴づけられる。低pHで強い緑色蛍光、高pHで強い青色蛍光を放出。この独自のpH依存性蛍光により、PDMPOはpKa=4.47で酸性オルガネラ(リソソームなど)の理想的pHプローブとなります。PDMPOは生細胞の酸性オルガネラ(リソソームなど)を選択的に標識し、2つの異なる放射ピークを比率測定で生細胞pH変動モニタリングに利用可能。しかし、BPSi投与前後の6細胞株でのpH値測定でも失敗。図S6結果のとおり、全6細胞株でBPSi投与前後で有意差なし。青/緑比率とpH値の相関は確立されたものの(図S7)、pH 4〜5での非線形相関により、PDMPO法はBPSi投与前後のエンド/リソソーム定量解析で失敗。
以上2つの市販pH指標データから、PEG修飾ナノ粒子(PEG鎖上のアミド)がアミドのアルカリ性によりエンド/リソソームpHを上昇させることを最初に実証。しかし、精密pH変化(0.1 pH範囲)の定量解析なしでは、オートファジー状態とエンド/リソソームpH値の相関確立ができず、オートファジー予測に失敗。
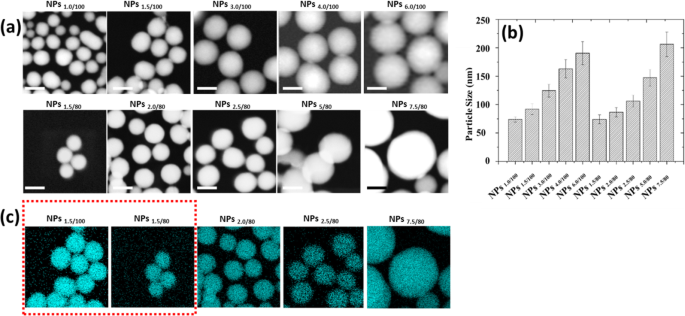
自己分解性ナノ粒子に関する過去の研究[13, 14][15, 22]に基づき、75%エタノール中のアンモニア水濃度を同一に保ちつつ、MBとTEOS濃度を調整。TEOS量を100 μLと80 μLの2系列に設定し、異なるシェル厚と孔径を取得。MB量を10系列に設定し、中心中空構造のサイズとMB担持効率を変化。
プロトコルで添加したMBとTEOS量は以下の表1の通り。
図2a、bに示す通り、ナノ粒子サイズはMB量増加に伴い両TEOS濃度(100 μLと80 μL)で増大。同一MB濃度ではTEOS量増加で粒子サイズ増大。さらにTEOS量増加でシェル厚が増大、元素マッピングで証明(図2c参照)。ナノ粒子の多分散性指数(PDI)と表面電荷を図S8と表S1に示す。形態学研究では、MB量増加で担持効率向上し放出プロファイル高速化、TEOS量増加で放出減速を予測。MB放出プロファイルがpH変化と線形相関する適切なMBとTEOS濃度を見つける必要があります。
MB担持効率をUV-Visスペクトルで決定。まず系列濃度MB溶液(6.25〜46.88 μg/mL)で標準曲線(図S9)を作成、式はy=67.63x+0.10919、R2=0.9987。上式で計算し、特定パラメータを持つ10自己分解性ナノ粒子のMB担持効率を取得、詳細データは図S10。
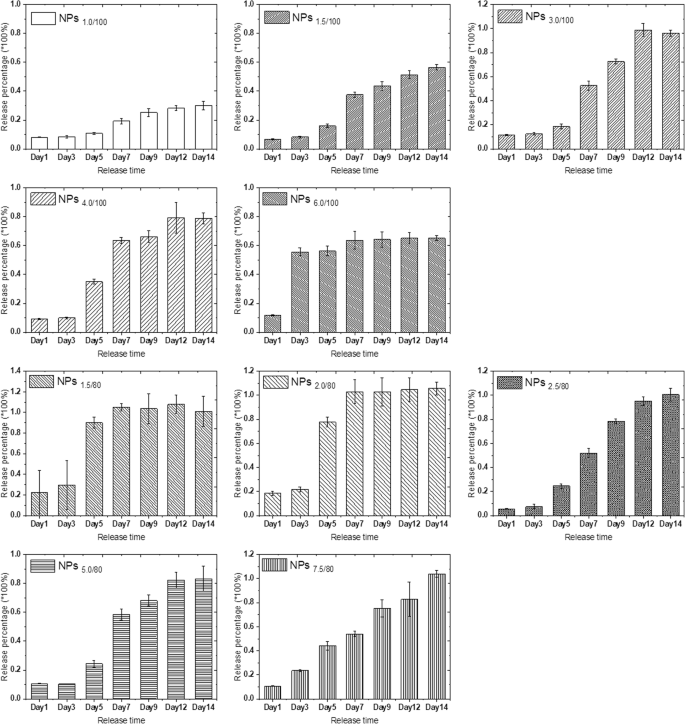
異なるpH溶液でのMB放出プロファイル研究前に、純水での放出プロファイルを研究。図S11、S12に示す通り、TEOS量80 μLの全ナノ粒子で、期間増加に伴いMB放出増加、UV-Vis吸光度に反映。さらに、MB封入量増加に伴いMB放出増加傾向がより顕著、放出速度も高速化。しかし、TEOS量が100 μLになると、粒子表面がより緻密になり、MB量3.0 mg未満では放出が遅く、14日間の放出でほぼ増加傾向観測されず。MB量が4.0 mg以上になると明確なMB放出増加傾向観測。注目すべきは、NP7.5/80とNP6.0/100のナノ粒子パラメータが時間経過とともに堅実な増加を示し、最初の7日間ほぼ線形増加傾向を示し、その後プラトーに達したこと。
その後、異なるpHバッファーでのMB放出挙動に焦点を当て、特定パラメータを持つ自己分解性ナノ粒子がpH依存的線形MB放出を示すかどうかを検証。
まず、pH 4.0バッファー溶液でMB放出実験を実施。図S13から、同一TEOS量100 μLで、MB放出速度が類似傾向、TEOS 80 μLの5ナノ粒子システム(図S14)では中心正相関がMB封入量と観測。
濃縮MBが濃度差により拡散で周囲溶液へ拡散。濃度勾配が大きいほどMB放出高速。純水でのMB放出と比較し、酸性環境がMB放出を加速することが判明(図S13、S14と図S11、S12比較)。これはMB放出が拡散のみで駆動されるわけではなく、酸性溶液ではMBの正電荷性質により静電反発も重要な駆動力となることを示唆。MB担持効率、MB標準曲線、測定時の希釈比に基づき各ナノ粒子パラメータの放出率を計算。放出率はpH 4.0酸性溶液でのMB放出速度を反映、結果(図3)ではNP7.5/80の放出率のみがpH 4.0溶液で線形放出を示した。他の特定MB/TEOSパラメータナノ粒子システムは類似放出傾向を示し、放出率は線形増加しなかった。例外はNP6/100で、MB放出が72時間でプラトーに達したため、その期間前の線形増加可能性をこの段階では判断困難。
一方、準中性とアルカリバッファー(pH 6.86とpH 9.18)でのMB放出プロファイルもテスト。図S15、S16、図S17、S18結果は、溶液pHが6.86に上昇するとMB放出が減速;さらに中心MB濃度増加でMB放出率低下。pH 9.18では、全10特定パラメータナノ粒子が非常に遅いMB放出(図S19、S20);UV-Vis吸光度でも放出率でもpH 6.86バッファーと類似傾向だが、さらに低い放出率。したがって、自己分解性ナノ粒子は酸性溶液でのみMB放出線形増加を示すことが明確。エンド/リソソームpHが4〜5であることを想起し、これは特定MB/TEOSパラメータでの時間関数としてのMB線形増加pH範囲と完全一致。したがって、自己分解性ナノ粒子システムがエンド/リソソーム平均pHの精密定量決定用精密測定ツールとなり得ることへの確信が深まり、オートファジー状態の正確なpH値エビデンスを提供可能。
特定自己分解性ナノ粒子をエンド/リソソームpH指標として使用する前提条件は、ナノ粒子が測定プロセス全体でエンド/リソソーム内で安定であること。次に、測定実施時にエンド/リソソームでのMB放出がスムーズに起こること。
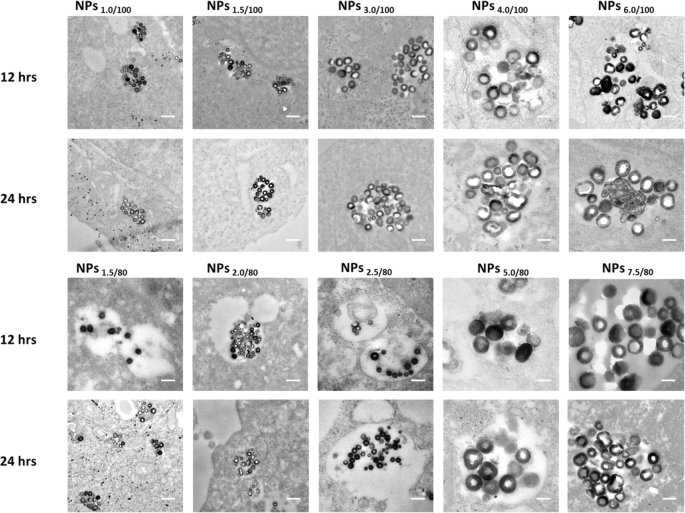
細胞TEM研究によるナノ粒子のエンド/リソソーム内コロカライゼーションと、6種類細胞株でのMB放出を研究。細胞TEM結果から、全10系列ナノ粒子がHepG-2細胞と24時間インキュベーション後、逃逸せずエンド/リソソーム内に留まることが判明(図4)。図4で使用したHepG2細胞直径は約10〜20 μm、MB@SiO2ナノ粒子直径は75〜200 nmの間であるため、低倍率画像(図S21参照)ではナノ粒子形態を明確化するのは非常に困難。他5細胞株でのナノ粒子細胞内局在も調査し、4ナノ粒子をランダム選択してナノ粒子がエンド/リソソーム内にトラップされていることを実証(図S22)。全パラメータナノ粒子が他5細胞株で24時間インキュベーション後、中心中空構造を示し、MB放出を示唆。より精密観察では、中空サイズ違いによりMB放出が異なる可能性があり、これは(1)異なる細胞のエンド/リソソームpHが異なり、(2)ナノ粒子からのMB放出がエンド/リソソームpHに非常に敏感、特にNP6/100とNP7.5/80で顕著であることを指摘。図S23から、ナノ粒子投与2時間後にはエンドサイトーシス実現し小胞内に留まり、その後徐々にリソソームに蓄積することが判明。
pH値とOD値の相関をpH 4.0〜4.8で評価。図5と図S24結果から、NP6/100とNP7.5/80ナノ粒子システムで、MB放出がpH 4.0〜4.8範囲でpHの関数として線形減少を示すことが判明。
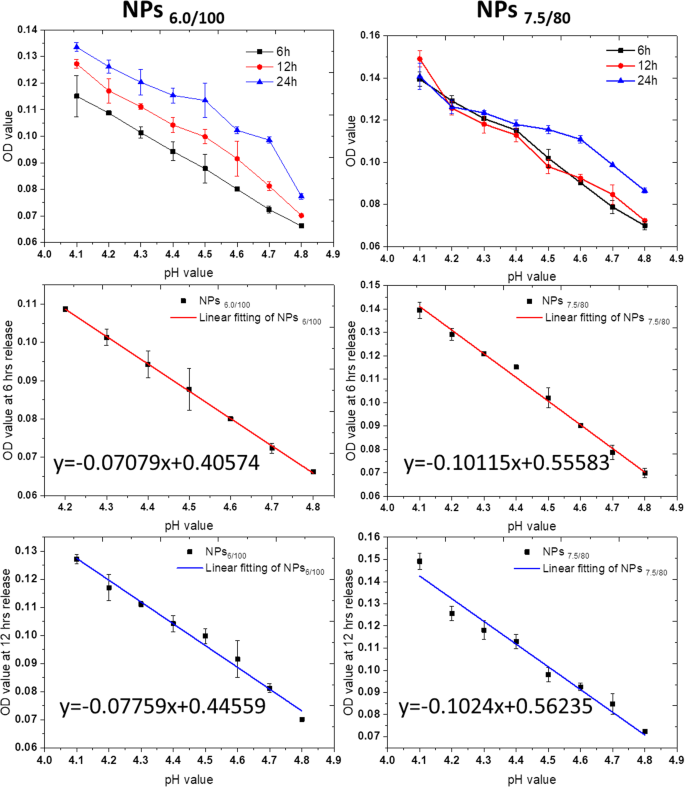
OD値をMB担持効率と投与量に基づきMB放出率に変換。図S25に示す通り、最初の6時間でNP6/100とNP7.5/80ナノ粒子システムのMB放出率もpH値の関数として提示。6時間と12時間放出期間で残差平方和とピアソン相関係数をそれぞれ算出。残差平方和は線形フィッティングの近さと負相関、ピアソン相関係数絶対値が1に近いほど線形性が高い。表S2、S3に示す通り、最高線形度はNP6.0/100ナノ粒子システムのフィッティング、次いでNP7.5/80が6時間放出で続く。
この時点で、精密pH値モニタリング手法が確立されたことに大きな興奮を覚えました。特に精度0.1 pH値間隔以下。これにより、エンド/リソソームpH値とオートファジー状態の相関解明の大きな可能性が得られ、オートファジーメカニズム研究とオートファジー過程予測に極めて重要。図S26に示す通り、HepG-2細胞でのMB放出は4時間インキュベーション後プラトーに達しているため、観察時点として6時間を選択。
その後、ナノ粒子細胞相互作用期間6時間でのNP6.0/100の6細胞株MB放出を慎重に調査。肝癌HepG-2細胞株、大腸癌HCT8、HCT15、HCT116細胞株、肺癌A549細胞株、筋メラノサイト癌B16細胞株を含む。
表2に示す通り、市販細胞内pH指標キットでは不可能な0.01 pH値精度で、6がん細胞株のエンド/リソソームを明確に区別。
さらに、BPSiナノ粒子培養前後のHepG2細胞エンド/リソソームpH値を再評価。BPSi取り込みがエンド/リソソームpH値を4.70±0.09から5.59±0.05へ有意に上昇させることを結論付け、BPSi取り込みによるオートファジー初期誘導とその後のオートファジーフラックス終了の理由を完璧に説明。BPSi細胞内取り込みによりエンド/リソソーム数量が増加、これは遺伝子シーケンシング結果(オートファジー関連遺伝子TFEB-CLEAR活性化)と整合。一方、エンド/リソソームpH値上昇によるオートファジー終了も、Western blot研究でのp62タンパク質アップレギュレーション結果と一致。
考察
ナノ粒子は一般的に細胞でオートファジーを誘発[23]。研究では、中性または陰性表面ナノ粒子への曝露ではオートファジックカーゴのクリアランス増強が関与するが、陽性表面ナノ粒子曝露ではTFEB経路の転写的アップレギュレーションをもたらすものの、リソソーム機能不全を引き起こし、最終的にはオートファジーフラックス遮断に至ることが示されている[7]。本結果はこれら先行結論と整合。本研究では、トランスクリプトームシーケンシング、RT-qPCR、Western実験を通じて、BPSiナノ粒子投与後のHepG2細胞でオートファジー関連遺伝子とタンパク質発現が増加することを発見。しかし、オートファジー関連P62タンパク質発現レベルはオートファジー活性化に伴い減少しない。BPSiナノ粒子表面のPEG-アミンがリソソームpH値を上昇させ、P62分解を阻害すると推測。既存リソソームpH指標ではこの推測を検証不能。生細胞リソソームpHを精密測定するため、自己分解性ナノ粒子システムベースのエンド/リソソームpH定性決定新手法を確立。特定MB/TEOSパラメータを持つ10ナノ粒子システムを用いて最適化pH感応測定法を取得。内側から外側への放射状MB濃度勾配がMB放出の主要駆動力。薬物放出はキャリア分解と同時進行し、拡散制御機構で駆動。さらにpH値低下で水素イオン濃度増加し、静電相互作用増強が内部MBを中性溶液より高速放出促進[24]。最適化中心中空ナノ粒子システムが、リソソームpHであるpH 4.0〜4.8範囲で中心濃縮MBを精密pH値の線形関数として放出可能。最終的に、自己分解性ナノ粒子ベース定性pH指標により、6細胞株リソソーム平均pH値検出に成功。さらに、このシステムでHepG-2細胞BPSiナノ粒子エンドサイトーシス前後のリソソームpH変化を定性的に区別し、BPSiエンドサイトーシス後のオートファジー発生と終了メカニズムを解明。自己分解性ナノ粒子システムは腔内pH値研究の全く新しい道を開き、細胞シグナリングと代謝をより良く理解する新ツールを提供し、がん治療の新たな方法とアプローチを提供[25, 26]。
結論
本研究では、トランスクリプトームシーケンシングでBPSiが細胞オートファジーを促進することを発見。しかし、ナノ粒子表面のアミノ基がリソソームpHを上昇させ、オートファジックフロー分解を阻害。したがって、リソソームpHがオートファジー段階に顕著影響。精密なリソソームpH情報取得はオートファジー理解を促進。しかし、既存蛍光リソソームpH指標は広い範囲のリソソームpHしか決定不能。したがって、自己解離システムベースの精密リソソームpH指標を確立。MB@SiO2合成パラメータ調整により、ナノ粒子担持MB放出がpHと線形負相関。ナノ粒子は細胞進入後主にリソソームに留まる。細胞内MB放出量測定により、線形関数に従いリソソームpH値を正確に算出可能。確立された精密pH指標は、リソソームpH値を精密研究し、オートファジーに関する更なる情報取得のための全く新しいツールと方法論を提供。
データと材料の入手可能性
本研究で生成・分析されたすべてのデータは、本公開論文と補足情報ファイルに含まれています。
略語
- BPSi:
- 黒色メソポーラスシリコン
- FBS:
- 胎児牛血清
- GO:
- 遺伝子オントロジー
- HCl:
- 塩酸
- KEGG:
- 京都遺伝子ゲノム百科事典
- MB:
- メチレンブルー
- NaBr:
- 臭化ナトリウム
- NaSi:
- ナトリウムシリサイド
- NH4Br:
- 臭化アンモニウム
- NPs:
- ナノ粒子
- OD:
- 光学密度
- PBS:
- リン酸緩衝生理食塩水
- PDMPO:
- 2-(4-ピリジル)-5-((4-(2-ジメチルアミノエチル-アミノカルバモイル)メトキシ)フェニル)オキサゾール
- RT-qPCR:
- 逆転写定量ポリメラーゼ連鎖反応
- TEOS:
- テトラエチルオルトシリケート
ナノマテリアル
- フィルムコンデンサ入門:特性、構造、実用応用
- SaaS監視の極意:クラウドアプリケーションの完全可視性を獲得する
- ガラス繊維布:革新、応用、持続可能なインパクト
- イカリイン負荷mPEGナノ粒子:H9c2細胞におけるLPS誘発心筋毒性に対する強化保護
- 可視光域で95%効率の超狭帯域完全吸収体によるプラズモニックセンシング
- マウスにおける二酸化チタンナノ粒子の用量依存的肝・脳・胚毒性
- フェニルトリメトキシシラン修飾アルミナから作製したAl2O3:SiOCナノコンポジットの合成・構造・光ルミネッセンス
- Au@TiO₂ヨーク-シェルナノ構造:制御合成とメチレンブルーの可視光分解・SERS検出への優れた性能
- 銅ナノ粒子のグリーン合成:触媒、抗菌、細胞毒性、抗酸化ポテンシャルのレビュー
- デュアルおよびトリ層SiO₂広帯域反射防止膜形態の高度TEM/STEM解析
- キキョウ根由来プラチコジンサポニンを用いた金・銀ナノ粒子のグリーン合成