



Nec-1によるRIP1調節を介したSH-SY5Y細胞における二酸化チタンナノ粒子誘導神経毒性の軽減
概要
二酸化チタンナノ材料は優れた物理化学的特性により多数の分野で応用されており、それが人間の健康への潜在的脅威となっている。最近の多数のin vivo研究で、二酸化チタンナノ粒子(TNPs)が様々な曝露経路で動物の脳に輸送されることが明らかになっている。吸収されたTNPsは脳に蓄積し、神経細胞を攪乱して脳機能障害を引き起こす可能性がある。in vitro研究でもTNPsの神経毒性が検証されている。しかし、TNPs神経毒性のメカニズムは不明確。ネクロプトーシスがTNPs神経毒性に関与するかは未知。そこでin vitro研究を実施し、TNPsがSH-SY5Y細胞で用量依存的に炎症障害を誘導し、ネクロスタチン-1(Nec-1)事前処理で軽減されることを発見。受容体相互作用性プロテインキナーゼ1(RIP1)がNec-1の標的と報告されているため、siRNAで沈黙化。変異型と野生型細胞をTNPsに曝露し、炎症障害を評価。RIP1発現沈黙がTNPs曝露による炎症障害を抑制。総合すると、Nec-1はRIP1を介してTNPs神経毒性を改善する。しかし、TNPs神経毒性とRIP1の相関を包括的に評価するには更なる研究が必要。
はじめに
優れた物理化学的特性により[1]、二酸化チタンナノ材料は合成され、化粧品[2]、工業分野[3, 4]、医療分野[5]など様々な目的で広く使用されている。しかし、この広範な使用は人間の健康に大きな脅威をもたらす可能性がある[6]。曝露後、大部分のTNPsは吸入と摂取で人体に侵入[6]。呼吸器系[7]、消化器系[8]、循環器系[9]が吸収されたTNPsによって障害される可能性がある。同様に、中枢神経系で最も重要な脳も、循環中のTNPsが血液脳関門を透過し、吸入NPsが嗅覚経路で脳に輸送されるため[10]、攪乱される可能性がある。一度脳に入ったTNPsは蓄積し、脳に損傷を与えて機能障害を引き起こす。脳損傷は通常不可逆的で深刻であり、潜在的原因は調査すべき[11]。
TNPs曝露と脳疾患の関連を探った疫学研究はないが、多数のin vivoおよびin vitro研究がTNPsの神経毒性を確認[12]。基盤メカニズム解明が主な焦点。我々は以前、TNPs神経毒性の既知分子メカニズムをレビューし、アポトーシスやオートファジーなどのプログラム細胞死(PCD)プロセスが関与することを発見[13]。
ネクロプトーシス(制御された壊死)は別のPCDタイプ。アポトーシスがカスパーゼ依存的であるのに対し、ネクロプトーシスは受容体相互作用性プロテインキナーゼ1/3(RIP1/RIP3)依存的。活性化RIP1がRIP3をリクルートしてネクロソームを形成し、混合系統キナーゼドメイン様タンパク質(MLKL)を活性化してネクロプトーシスを開始[14]。ネクロプトーシスは細胞死と神経炎症を制御[15, 16]、これらは両方ともTNPs神経毒性に関与。したがって、ネクロプトーシスがTNPsによる神経毒性に関与すると仮説を立てた。
仮説検証のため、TNPs神経毒性におけるネクロプトーシスの役割を探るin vitro研究を実施。TNPs曝露後、細胞生存率、LDH漏出、炎症性サイトカイン(TNF-α、IL-1β、IL-6、IL-8)を測定。まずSH-SY5Y細胞を様々な濃度のTNPsで培養。次に、ネクロプトーシス強力阻害剤Nec-1あり/なしでTNPs曝露。第3に、Nec-1で抑制可能なRIP1遺伝子発現をsiRNAで沈黙化し、変異型と野生型細胞をTNPsで処理。本研究はTNPs神経毒性の分子メカニズム包括的理解に光を当てる。
結果
TNPsによる細胞生存率抑制
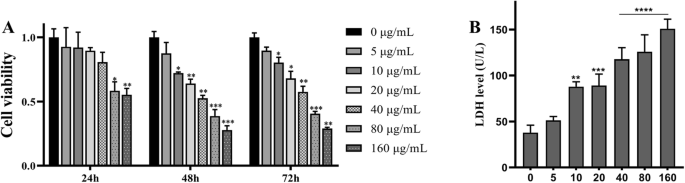
SH-SY5Y細胞へのTNPs細胞毒性を検証するため、CCK8アッセイで細胞生存率を評価。細胞を5-160μg/mLのTNPs濃度で24、48、72時間培養。図1に示すように、24時間曝露では5、10、20、40μg/mL処理群で細胞生存率に変化なし。48、72時間では5μg/mL群のみ変化なし(48時間でp=0.4507、72時間でp=0.1002)。さらに、80μg/mL TNP処理群で48時間(p=0.0007)と72時間(p=0.0008)後に細胞生存率が劇的に低下。これらの結果から、TNPsが用量・時間依存的に細胞生存率を低下させることを結論付け、長期曝露の方がより毒性が強いことを示唆(データ未提示)。
TNPsによる膜完全性損傷
次に、72時間曝露後のTNPs膜完全性への毒性影響を解析。LDH漏出測定で膜完全性を評価。図1bに示すように、5μg/mL以上のTNPs処理群でLDHレベルが有意に上昇。40、80、160μg/mL処理群でLDH産生増加(p<0.0001)。これらの結果は、TNPsがCCK8アッセイと同様に用量依存的にLDHレベルを上昇させることを示唆。
TNPs曝露による炎症促進
TNPs曝露後の炎症反応をELISAで解析。様々なTNPs濃度で72時間処理後、TNF-α、IL-1β、IL-6、IL-8レベルを測定。図2に示すように、IL-8分泌は全TNPs処理細胞でアップレギュレート;TNF-α、IL-1β、IL-6、IL-8レベルは5μg/mL以上で一様に上昇(p<0.01)。さらに、10μg/mL以上群で炎症が有意に高い(p<0.0001)。総じて、TNPsは用量依存的に炎症を増強。
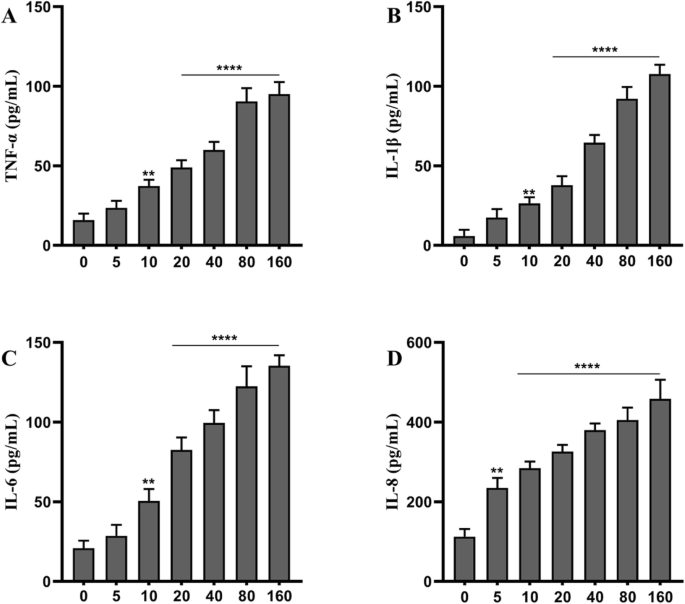
結果はTNPsが用量依存的に炎症障害を誘導することを示唆。以降の実験でネクロプトーシスの役割を探るため、TNPs濃度80μg/mL、曝露期間72時間を採用。
Nec-1共処理によるTNPs神経毒性抑制
炎症障害におけるネクロプトーシスの役割を分析するため、Nec-1(ネクロプトーシス阻害剤)とTNPsを共処理。図3aに示すように、SH-SY5Y細胞をTNPsまたはTNPs+Nec-1(1、5、10、15、20μM)に曝露し、Nec-1がTNPs誘導細胞生存率低下を劇的に改善(10、15、20μM)(p<0.0001)。15μMと20μM処理群の細胞生存率が10μM群より高くなかった(p=0.6643、p=0.6292)ため、膜完全性への影響を分析するため10μM Nec-1で共処理。
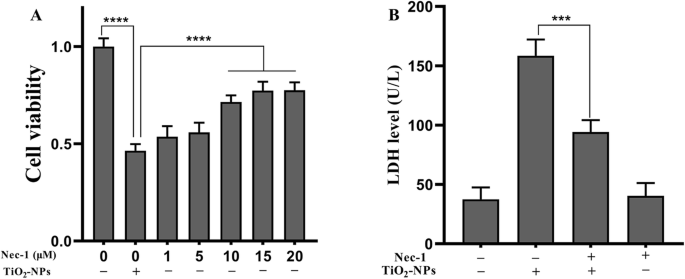
TNPsまたはTNPs+Nec-1で培養後、TNPs+Nec-1群のLDHレベルがTNPs単独群より大幅に低い(p=0.0005)。また、Nec-1単独処理はLDH漏出を増加させない(p=0.9878)。
結論として、10μM Nec-1はTNPs細胞毒性を効果的に抑制し、細胞に毒性がない。
Nec-1の抗炎症能力を分析するため、TNPsまたはTNPs+Nec-1で細胞を培養。図4に示すように、TNPs+Nec-1群ではTNPs群よりTNF-α(p=0.003)、IL-1β(p=0.0013)、IL-6(p<0.0001)、IL-8(p=0.0004)産生が有意に低い。
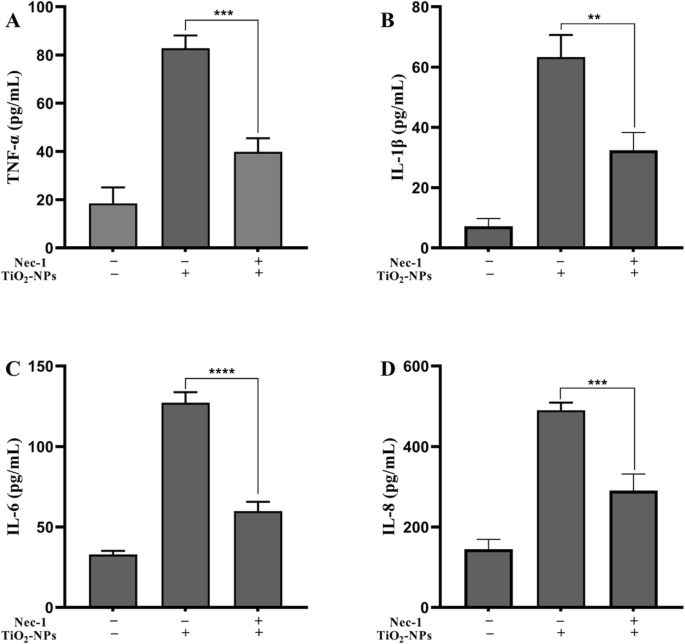
これらの結果は、Nec-1がTNPs曝露による炎症反応を軽減できることを示唆。
RIP1沈黙によるTNPs誘導炎症障害の軽減
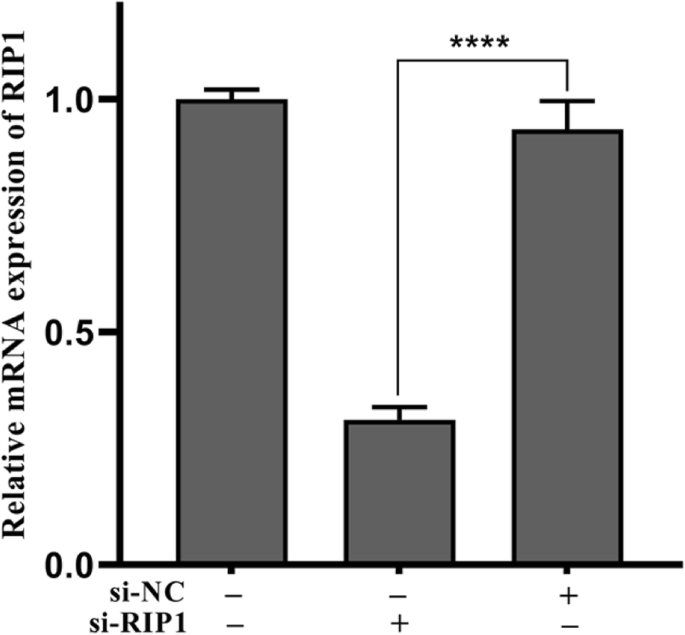
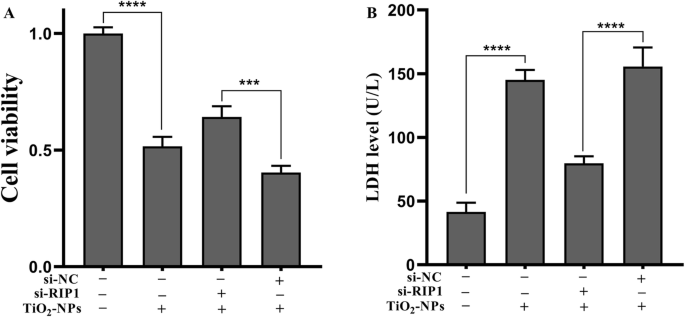
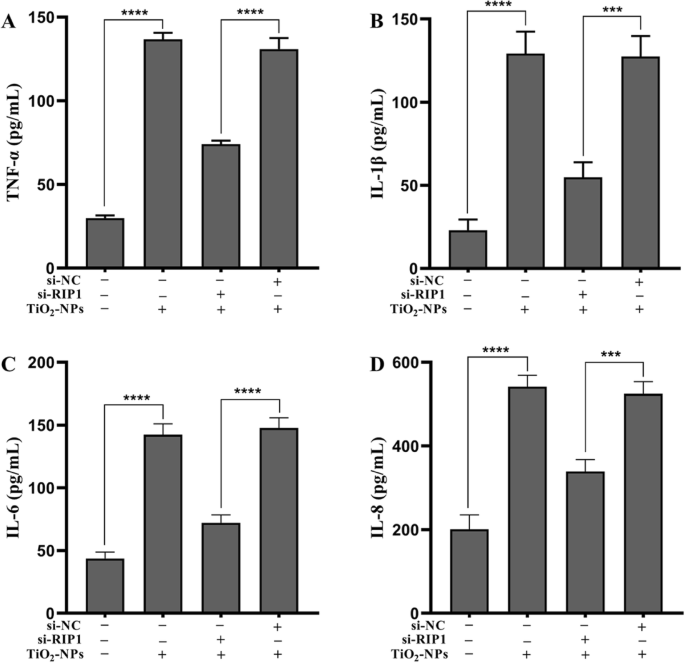
Nec-1がRIP1を介してTNPs誘導炎症障害を阻害するか判断するため、siRNAでRIP1発現を効果的に沈黙化(図5、p<0.0001)。次に、変異型と野生型細胞でのTNPs曝露後の炎症障害を測定。図6aは、TNPs+si-RIP1群の細胞生存率がTNPs+si-NC群より顕著に高いことを示す(p=0.0002)。LDH産生(図6b、p<0.0001)とTNF-α(p<0.0001)、IL-1β(p=0.0001)、IL-6(p<0.0001)、IL-8(p=0.0001)レベル(図7)がTNPs+si-RIP1群でTNPs+si-NC群より劇的に低い。これらの結果は、TNPsがRIP1を介して炎症障害を促進することを示唆。
考察
本研究で、TNPs曝露がSH-SY5Y細胞に用量依存的に細胞毒性を誘導し、ネクロプトーシスがTNPs神経毒性に関与することを発見。ネクロプトーシスの役割を探るため、強力ネクロプトーシス阻害剤Nec-1[17, 18]あり/なしでTNPs曝露し、細胞生存率、LDH漏出、炎症性サイトカインレベルを測定。データはNec-1共処理がTNPs誘導炎症障害を軽減できることを示唆。Nec-1がRIP1活性抑制により効果を発揮することが示されているため[17, 18]、si-RIP1で細胞をトランスフェクションし、RIP1がNec-1の保護効果に関与するか判断。変異型と野生型細胞をTNPsで処理し、炎症障害を評価。si-RIP1群で細胞生存率がsi-NC群より高く、TNPs曝露後、LDH漏出と炎症性サイトカインレベルがsi-RIP1群でsi-NC群より低いことを示した。結論として、ネクロプトーシスがTNPs誘導細胞炎症障害に関与することを初めて明らかにした。
in vitro研究でTNPs神経毒性を再確認。SH-SY5Y細胞を様々な濃度のTNPsで様々な時間曝露後、CCK8アッセイで細胞生存率評価。図1aに示すように、TNPs曝露が用量依存的に細胞生存率を低下;48、72時間曝露後、80、160μg/mL TNP群で対照群と比較して細胞生存率が劇的に低下(p<0.001)。細胞毒性をさらに確認するためLDH漏出も測定。図1bのデータは、72時間曝露後LDH産生が用量依存的に増加、40、80、160μg/mL群で対照群より著しく高い(p<0.0001)ことを示す。先行研究でTNPs曝露が神経炎症を促進することが示されているため[19]、TNF-α、IL-1β、IL-6、IL-8レベルも測定。図2はこれら4炎症性サイトカインレベルが対照群と比較して有意にアップレギュレートされ、20-160μg/mL群で劇的に高い(p<0.0001)ことを示す。総じて、TNPsが用量依存的に神経毒性を誘導することを示し、先行研究と一致。TNPsは神経細胞に吸収され増殖を阻害[20-22]。さらに、TNPs曝露は用量依存的に細胞生存率低下とLDH漏出促進をもたらす[23-27]。
ネクロプトーシスがTNPsによる神経毒性に関与するか明確にするため、Nec-1で共処理。指定濃度TNPsをNec-1あり/なしで処理後、細胞生存率、LDH漏出、炎症を評価。図3aは、TNPs曝露後の細胞生存率低下が10μM Nec-1共処理で有意に抑制されることを示す。一方、図3bは10μM Nec-1処理がLDHレベルを増加させず、TNPs+Nec-1群のLDHレベルがTNPs単独群より劇的に低いことを示す。次に、Nec-1共処理のTNPs誘導炎症への影響を測定。図4はTNF-α、IL-1β、IL-6、IL-8レベルがTNPs+Nec-1処理細胞で著しく低いことを示す。これらの結果は、Nec-1が細胞を死と炎症プロセスから保護できることを再確認[28, 29]。
最後に、RIP1がNec-1の標的であるため、RIP1がTNPs神経毒性を制御できるか評価。RIP1発現沈黙で変異型細胞を構築(図5)。図6、7のデータは、TNPs曝露後、細胞生存率が高く、LDH、TNF-α、IL-1β、IL-6、IL-8レベルがsi-RIP1群でsi-NC群より低いことを示し、TNPsがRIP1を介して細胞毒性を促進することを示唆。同様に、複数研究でRIP1が細胞死と炎症プロセスの両方を制御できることが明らかになっている[30, 31]。
Nec-1がネクロプトーシスシグナル経路抑制によりTNPs神経毒性を軽減することを初めて報告したが、本研究にはいくつか限界がある。第一に、ナノサイズ材料の細胞毒性はバルク材料と異なり、表面特性に大きく影響される[32]ため、Sebastiánら[33]の細胞生存率増加という相反する結果を説明できる可能性。したがって、細胞増殖、膜完全性、酸化ストレス、炎症、ミトコンドリア機能、細胞周期、細胞骨格、エピジェネティクスなど多角的にナノ毒性を包括的に評価することが不可欠。第二に、RIP1はRIP3をリクルートして機能的ネクロソームを形成し、MLKLを活性化してネクロプトーシスを開始[34]。RIP3/MLKLがTNPs神経毒性に関与する可能性があり、今後の研究で探求すべき。さらに、RIP3/MLKLとTNPs神経毒性の関連も評価すべき。第三に、反応性酸素種(ROS)はTNPs神経毒性の主要メカニズム[35, 36]であり、RIP1の上流シグナルと報告[37]。したがって、TNPs神経毒性でROSがRIP1の上流にあるかさらに議論すべき。第四に、非毒性濃度(TNPs<5μg/mL)で長期間(72時間以上)曝露し、慢性細胞毒性を評価すべき。第五に、より多くの神経細胞株、ヒトと動物の初代神経細胞で、TNPs神経毒性におけるネクロプトーシスの役割を評価すべき。
結論
本研究で、ネクロプトーシスがTNPsによる神経毒性に関与する別のプログラム細胞死メカニズムであることを明らかにした。TNPsがSH-SY5Y細胞で用量依存的に炎症障害を誘導し、強力ネクロプトーシス阻害剤Nec-1共処理がそれら有害効果を改善できることを発見。Nec-1の標的であるRIP1をsiRNAで沈黙化し、TNPs曝露による炎症障害を効果的に軽減。結論として、Nec-1はRIP1経路を標的とすることで、TNPs曝露によるSH-SY5Y細胞炎症障害を抑制。TNPs神経毒性に関与するRIP1の上流・下流シグナル経路をさらに評価すべき。
材料と方法
TNPs調製と細胞培養
先行発表手順[38]に従い、以前TNPsを特性評価し調製。簡潔に、TNPsをRPMI 1640に溶解し、5、10、20、40、80、160μg/mLの様々な濃度に調整。TNP溶液を滅菌し、室温で超音波処理(300W、10分)して凝集防止。TNPs非曝露培養培地中の細胞を対照群とした。SH-SY5Y細胞は中国科学院上海生命科学研究所細胞バンクから購入し、10%胎児牛血清(Gibco、Thermo Fisher Scientific製品ライン、米国マサチューセッツ州ウォルサム)、100U/mLペニシリン、100μg/mLストレプトマイシン含有RPMI 1640培地(HyClone、米国ユタ州ローガン)で、37℃、5% CO₂、湿潤インキュベーターで培養。
細胞生存率とLDH漏出アッセイ
細胞生存率をセルカウンティングキット-8(CCK8、Dojindo、cat no.CK04)で測定。簡潔に、1×10⁴ SH-SY5Y細胞を96ウェルプレートに播種し、TNPs曝露前24時間、37℃(5% CO₂)インキュベーターで培養。その後、様々な濃度(0、1.25、2.5、5、10、20、40、80μg/mL)のTNPsでさらに24時間培養。処理後、CCK-8でさらに2時間培養。次に、マイクロプレートリーダー(BioTek、米国バーモント州ウィノスキ)で96ウェルプレートを450nmで光学密度(OD)測定。各群の細胞生存率(パーセント)を(OD処理群-ODブランク)/(OD対照群-ODブランク)×100%で計算。
膜完全性を市販キット(南京建成生物工学研究所、中国)で測定。SH-SY5Y細胞を様々な濃度のTNPsで72時間曝露後、メーカー指示に従いLDH分泌を分析。
炎症反応
SH-SY5Y細胞産生TNF-α、IL-1β、IL-6、IL-8レベルをELISAで測定。簡潔に、SH-SY5Y細胞をTNPsで72時間曝露し、メーカー指示(Elabscience Biotechnology Co., Ltd.)に従い上清を回収して分析。
siRNAトランスフェクション
メーカープロトコルに従い、100nM濃度のsi-RIP1またはネガティブコントロールsiRNA(si-NC)をLipofectamine 2000で細胞にトランスフェクション。siRNAによる遺伝子沈黙効率をリアルタイムPCRで推定。
リアルタイムPCR
様々な濃度TNPs曝露細胞のRNAをRNAqueousキット(Ambion Inc.、米国テキサス州オースティン)でメーカー指示に従い分離。RIP1相対発現をリアルタイムPCRで測定。RIP1相対mRNAレベルをβ-actin発現で正規化。
統計解析
SPSS 11.0ソフトウェア(SPSS Inc.、米国イリノイ州シカゴ)でデータ解析。一元配置分散分析で群間平均比較。p<0.05を統計的有意とした。
ナノマテリアル
- IBM科学者たち、室温で単一金原子コンタクトの熱伝導率を初測定
- グラフェンによるナノ材料の精密配置で産業規模デバイス統合を実現
- ナノツリーZnOナノワイヤーで染料増感太陽電池効率を向上
- 高効率グラフェン太陽電池:TFSAドーピングで9%変換効率達成
- ナノヘテロ接合:コロイド量子ドットで太陽電池効率を向上
- 先進がん治療のための細胞ベース薬物送達システム
- 希土類ナノ粒子とコレステロールのハイブリッドナノ複合体がEhrlich癌のCD44⁺ CSCsを阻害、腫瘍増殖75%減少と生存期間延長
- 高効率・低コストペロブスカイト太陽電池:進展、課題、将来方向性
- GaN/Feナノ粒子を用いた体外での内皮細胞の磁気誘導
- 二酸化チタン(TiO₂)市場アップデート – 2021年第1四半期 価格、供給、地域見通し
- プレミアム二酸化チタンホワイトマスターバッチ生産 – サンライズカラーズ